Oversikt
Fettvev er ikke en passiv energireserve, men et dynamisk organ som lagrer og mobiliserer energi, isolerer kroppen, beskytter organer og kommuniserer med hjerne, lever, skjelettmuskulatur, pankreas, immunsystem og hjerte. Det består av modne adipocytter, preadipocytter og andre progenitorceller samt endotelceller, fibroblaster og flere typer immunceller. Fettvevets biologiske egenskaper varierer dessuten mellom ulike anatomiske depoter [1,2].
Den metabolske risikoen bestemmes derfor ikke bare av den totale fettmassen. Minst like viktig er:
- hvor fettet lagres
- om fettvevet ekspanderer gjennom flere eller større adipocytter
- om karforsyning og ekstracellulær matriks kan tilpasses ekspansjonen
- graden av inflammasjon og fibrose
- fettvevets insulinfølsomhet og evne til å hemme lipolyse etter måltid
- dets sekresjon av adipokiner
- om lipider begynner å hope seg opp i organer som lever, skjelettmuskulatur, pankreas og hjerte
Et velfungerende subkutant fettvev kan fungere som en metabolsk buffer. Når lagringskapasiteten ikke strekker til, øker strømmen av fettsyrer til visceralt fettvev og til organer som normalt ikke er tilpasset langvarig lipidlagring. Dette bidrar til insulinresistens, aterogen dyslipidemi, metabolsk dysfunksjonsassosiert steatotisk leversykdom, type 2-diabetes og hjerte- og karsykdom [1,2].
Hvitt, brunt og beige fettvev
Hvitt fettvev
Hvitt fettvev utgjør størstedelen av fettvevet hos voksne. Den modne hvite adipocytten inneholder vanligvis én stor lipidvakuole som opptar mesteparten av cellen og presser kjernen ut mot periferien. Triglyserider lagres etter måltid og kan ved faste eller fysisk aktivitet hydrolyseres til glyserol og frie fettsyrer.
Insulin stimulerer glukoseopptak og lipogenese og hemmer lipolyse. Katekolaminer og natriuretiske peptider kan derimot stimulere lipolyse. I en frisk adipocytt er disse prosessene nøye regulert, slik at fettvevet tar opp lipider når energitilgangen er høy og frigjør dem når andre organer trenger brensel.
Hvitt fettvev har også mekaniske og termiske funksjoner. Subkutant fett begrenser varmetap, og fett rundt blant annet nyrer, øyne og ledd gir støtdemping og støtte. Den viktigste moderne innsikten er likevel at hvitt fettvev fungerer som et endokrint og immunologisk organ, ikke bare som et lagringssted.
Brunt fettvev
Brune adipocytter inneholder mange små lipiddråper, rikelig med mitokondrier og høyt uttrykk av frakoblingsproteinet UCP1. Når UCP1 aktiveres, kan protoner vende tilbake over mitokondriets indre membran uten å drive ATP-syntese. Energien fra substratoksidasjonen omdannes da til varme. Dette er grunnlaget for ikke-skjelvende termogenese [3].
Aktiveringen styres først og fremst av sympatisk noradrenalinfrigjøring ved kulde. Brunt fettvev tar da opp og oksiderer både fettsyrer og glukose. Vevet er særlig betydningsfullt hos nyfødte, men finnes også hos voksne, hovedsakelig i dype cervikale, supraklavikulære, paravertebrale og mediastinale regioner. Aktiviteten kan påvises med kuldestimulert FDG-PET i forskningssammenheng [4].
Mengden aktivt brunt fettvev har en tendens til å være lavere ved høyere alder og større kroppsfettmasse. Kuldeakklimatisering kan øke aktiviteten og har i mindre humanstudier bedret glukoseomsetning og insulinfølsomhet. Den totale mengden brunt fettvev hos voksne er imidlertid begrenset, og bidraget til døgnets energiforbruk er vanligvis for lite til alene å gi et klinisk betydningsfullt vekttap [4,5].
Beige fettvev
Beige adipocytter opptrer hovedsakelig i subkutant hvitt fettvev. I ustimulert tilstand ligner de hvite adipocytter, men etter for eksempel langvarig kuldeeksponering kan de utvikle høyere mitokondrieinnhold, UCP1-uttrykk og termogen kapasitet. Prosessen kalles gjerne bruning.
Klassiske brune og beige adipocytter overlapper funksjonelt, men har delvis ulik utviklingsmessig opprinnelse. Beige adipocytter kan dannes ved differensiering av spesifikke progenitorceller og sannsynligvis også ved fenotypisk omdanning av modne hvite adipocytter. Den relative betydningen av disse mekanismene varierer mellom fettdepoter og fysiologiske tilstander [4].
Bruning er tydelig metabolsk gunstig i flere dyremodeller, men overføringen til behandling av mennesker er vanskelig. Adrenerg stimulering kan aktivere termogent fettvev, men kan samtidig øke puls og blodtrykk. Det finnes ennå ingen etablert behandling der aktivering av brunt eller beige fettvev brukes som selvstendig metode mot obesitas [5].
| Egenskap | Hvitt fettvev | Brunt fettvev | Beige fettvev |
|---|---|---|---|
| Hovedfunksjon | Energilagring og endokrin signalering | Varmeproduksjon | Induserbar varmeproduksjon |
| Lipiddråper | Vanligvis én stor | Flere små | Flere små etter aktivering |
| Mitokondrier | Relativt få | Mange | Øker ved aktivering |
| UCP1 | Lavt eller mangler | Høyt | Induserbart |
| Vanlig lokalisasjon | Subkutant og visceralt | Cervikalt, supraklavikulært og paravertebralt | Hovedsakelig i subkutant hvitt fettvev |
| Klinisk betydning | Sentralt for metabolsk homeostase og dysfunksjon | Bidrar til kuldetermogenese | Potensielt behandlingsmål, ennå ikke etablert |
Adipocyttens hypertrofi og hyperplasi
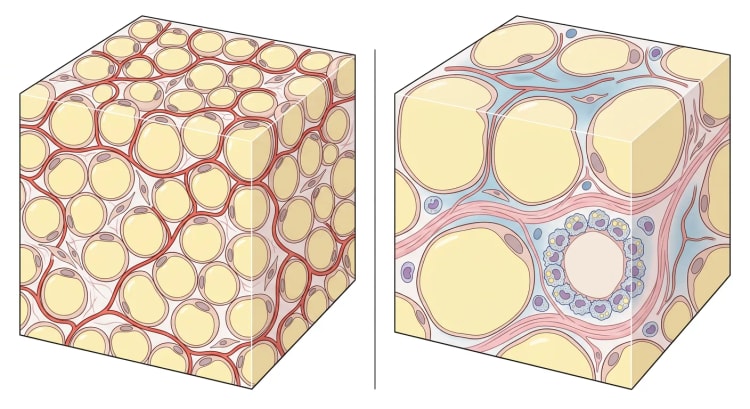
Fettvev kan ekspandere på to prinsipielt ulike måter. Hypertrofi innebærer at eksisterende adipocytter blir større. Hyperplasi innebærer at nye adipocytter dannes gjennom rekruttering og differensiering av progenitorceller.
Begge prosessene forekommer ved vektøkning, men den relative betydningen varierer mellom individer og depoter. Ved et begrenset energioverskudd lagrer eksisterende adipocytter mer triglyserider. Dersom vevet har god adipogen kapasitet, kan nye, små og insulinfølsomme adipocytter dannes. Lipidbelastningen fordeles da på flere celler. Dette regnes som en gunstigere ekspansjon enn uttalt hypertrofi [2,6].
Adipogenesen reguleres av et nettverk av transkripsjonsfaktorer der PPAR-gamma og C/EBP-alfa har sentrale roller. Progenitorcellene må først determineres til adipocyttlinjen og deretter gjennomgå terminal differensiering. Den ferdige adipocytten utvikler blant annet insulinfølsomhet, glukosetransportører, lipogene enzymer og evne til å utskille adipokiner. Progenitorcellenes egenskaper er forskjellige i subkutant, visceralt og organspesifikt fettvev [7].
Hypertrofe adipocytter har ofte:
- dårligere insulinfølsomhet
- høyere basal lipolyse
- dårligere hemming av lipolyse etter måltid
- større frigjøring av frie fettsyrer
- lavere adiponektinproduksjon
- økt sekresjon av kjemokiner og proinflammatoriske mediatorer
- større risiko for hypoksi, cellulært stress og celledød
Store adipocytter er altså ikke bare større energilagre, men har en endret biologisk fenotype. Hypertrofi er særlig ugunstig når angiogenese, innervasjon og ombygging av ekstracellulær matriks ikke holder tritt med ekspansjonen.
Hyperplasi er ikke alltid problemfri. En stor total fettmasse kan medføre mekanisk sykelighet og langsiktig metabolsk risiko selv om adipocyttene er relativt velfungerende. På vevsnivå er en ekspansjon med mange mindre adipocytter likevel vanligvis forbundet med bedre insulinvirkning og mindre ektopisk fettavleiring enn den samme fettmassen fordelt på få, svært store adipocytter [2,6].
Fettvevet som endokrint organ
Fettvevet utskiller hormoner, cytokiner, kjemokiner, vekstfaktorer, vasoaktive substanser, lipider, ekstracellulære vesikler og mikro-RNA. Disse signalene virker lokalt i fettvevet, på tilgrensende organer eller systemisk via sirkulasjonen. Samlebetegnelsen adipokiner brukes ofte, selv om mange av stoffene også dannes i andre celletyper [8].
Fettvevets sekretoriske funksjon påvirker blant annet:
- appetitt og energibalanse
- insulinsekresjon og insulinfølsomhet
- leverens glukoseproduksjon og lipidomsetning
- muskelens glukoseopptak
- inflammasjon og immunfunksjon
- kartonus og endotel
- blodtrykk
- hemostase og fibrinolyse
- reproduksjonsfunksjon
- benomsetning
Det sekretoriske mønsteret avhenger av fettdepot, adipocyttstørrelse, kjønnshormoner, energibalanse, oksygenering og inflammasjonsgrad. Ikke alle adipokiner kommer fra selve adipocyttene. Ved obesitas kan en betydelig del av for eksempel tumornekrosefaktor alfa, interleukin 6 og flere kjemokiner produseres av makrofager og andre celler i fettvevets stromale vaskulære fraksjon.
Dysfunksjonelt fettvev kjennetegnes ofte av redusert sekresjon av insulinsensitiserende signaler, for eksempel adiponektin og adipsin, samtidig som resistin, retinolbindende protein 4 og flere inflammatoriske mediatorer øker. Dette endrer kommunikasjonen med lever, pankreas, hjerte og andre målorganer [9].
Adipokiner: leptin, adiponektin og resistin
Leptin
Leptin produseres hovedsakelig i hvite adipocytter, og sirkulerende nivåer gjenspeiler grovt sett kroppens energilagre. Hormonet virker i hypothalamus og reduserer sult, samtidig som det signaliserer at energitilgangen er tilstrekkelig for blant annet reproduksjon og normal nevroendokrin funksjon.
Ved medfødt leptinmangel fører hormonmangelen til uttalt hyperfagi og alvorlig obesitas. Ved vanlig obesitas er leptinnivåene derimot oftest høye. Likevel uteblir den forventede appetittdempingen, noe som gjerne beskrives som leptinresistens. Mulige mekanismer er nedsatt transport over blod-hjerne-barrieren og forstyrret signalering i leptinfølsomme nevroner.
Leptin har også effekter på immunsystem, sympatikus, trombocytter, endotel og karvegg. Høye leptinnivåer er assosiert med inflammasjon, hypertensjon og aterosklerose, men sammenhengene påvirkes sterkt av samtidig fettmasse og insulinresistens. Leptin skal derfor ikke tolkes som et isolert mål på kardiovaskulær risiko [10,11].
Adiponektin
Adiponektin dannes først og fremst i adipocytter, men skiller seg fra leptin ved at sirkulerende nivåer ofte synker ved visceral obesitas og adipocyttdysfunksjon. Hormonet fremmer fettsyreoksidasjon og er knyttet til bedre insulinvirkning, antiinflammatoriske effekter og beskyttende virkning i karveggen.
Lave adiponektinnivåer er assosiert med insulinresistens, type 2-diabetes, steatotisk leversykdom og hjerte- og karsykdom. Sammenhengene er imidlertid ikke enkle. Ved enkelte avanserte sykdomstilstander, særlig hjertesvikt og nyresvikt, kan høye nivåer forekomme og gjenspeile endret eliminasjon, katabolisme eller kompensatorisk signalering.
Adiponektin er biologisk interessant, men brukes ikke rutinemessig som diagnostisk prøve ved obesitas eller metabolsk sykdom.
Resistin
Hos forsøksdyr produseres resistin i stor grad av adipocytter og har vært knyttet til insulinresistens. Hos mennesker kommer en betydelig del i stedet fra monocytter og makrofager. Resistin er assosiert med inflammasjon, endotelpåvirkning og aterosklerotisk sykdom, men den selvstendige betydningen for human insulinresistens er mindre klar enn for leptin og adiponektin [9,11].
Flere signalmolekyler
Fettvevet produserer også blant annet adipsin, chemerin, omentin, visfatin, apelin, fibroblastvekstfaktor 21 og retinolbindende protein 4. Noen signaler er overveiende beskyttende, andre overveiende skadelige, men mange har kontekstavhengige effekter. Inndelingen i gode og dårlige adipokiner er derfor en forenkling.
Subkutant og visceralt fett
Anatomiske og funksjonelle forskjeller
Subkutant fettvev ligger mellom hud og fascie og utgjør vanligvis kroppens største fettdepot. Visceralt fettvev ligger inne i bukhulen, blant annet i omentet og mesenteriet. Retroperitonealt fett regnes noen ganger separat, men inngår ofte i bredere mål på intraabdominalt fett.
Subkutant fett er heterogent. Det subkutane bukfettet skiller seg fra gluteofemoralt fett på lår og sete. Gluteofemoralt fettvev har god kapasitet til å ta opp og langsiktig holde på fettsyrer. Det kan dermed fungere som en metabolsk buffer som begrenser lipidstrømmen til lever og andre organer [1].
Viscerale adipocytter har i gjennomsnitt høyere lipolytisk aktivitet og er mindre følsomme for insulinets antilipolytiske effekt. Mesenteriske fettsyrer og glyserol kan nå leveren via portsirkulasjonen. Dette kan bidra til leverens triglyseriddannelse, glukoseproduksjon og produksjon av VLDL [12].
Visceralt fettvev inneholder ofte flere immunceller og har et mer proinflammatorisk sekretorisk mønster enn gluteofemoralt subkutant fettvev. Den metabolske risikoen gjenspeiler samtidig en større systemsvikt: stor visceral fettmengde faller ofte sammen med begrenset subkutan ekspansjonsevne, leversteatose og annen ektopisk fettavleiring [12,13].
Kjønn, alder og hormoner
Før menopausen lagrer kvinner i gjennomsnitt en større andel fett subkutant, særlig gluteofemoralt, mens menn oftere har en høyere andel visceralt fett. Østrogensignalering bidrar til denne forskjellen. Etter menopausen øker den relative viscerale fettavleiringen, og den metabolske risikoprofilen endres [14,15].
Aldring, fysisk inaktivitet, søvnmangel, genetisk predisposisjon og hormonelle endringer påvirker også fordelingen. Kroppsmasseindeks kan derfor ikke alene forutsi mengden visceralt fett.
Klinisk betydning
Visceral og ektopisk fettavleiring er sterkere knyttet til insulinresistens og kardiometabolsk sykdom enn subkutant fett på lår og sete. Personer med samme kroppsmasseindeks kan ha svært ulik metabolsk risiko. Også en person med normal kroppsmasseindeks kan ha en ugunstig kombinasjon av lav muskelmasse, mye visceralt fett og leversteatose. Omvendt kan en person med obesitas ha stor subkutan fettmasse, men forholdsvis lite visceral og ektopisk fettavleiring [1,13].
Midjeomkrets gir mer informasjon om sentral fettopphopning enn kroppsmasseindeks alene, men kan ikke skille subkutant bukfett fra visceralt fett. Computertomografi og magnetresonanstomografi kan kvantifisere depotene betydelig bedre, men brukes ikke rutinemessig utelukkende for metabolsk risikovurdering.
Inflammasjon i fettvevet
Friskt fettvev inneholder immunceller som bidrar til vedlikehold av vevet, ombygging og fjerning av døde celler. Inflammasjon er derfor ikke i seg selv patologisk. Kortvarig og regulert inflammasjon er nødvendig blant annet ved angiogenese og ekspansjon av fettvevet. Problemet oppstår når prosessen blir kronisk [16].
Hypertrofe adipocytter kan utvikle relativ hypoksi når karforsyningen ikke vokser i takt med cellenes størrelse. Mekanisk stress, stress i endoplasmatisk retikulum, oksidativt stress, frie fettsyrer og celledød bidrar til frigjøring av kjemokiner. Monocytter rekrutteres fra sirkulasjonen og differensierer til makrofager.
Makrofager hoper seg ofte opp rundt døde eller alvorlig skadde adipocytter og danner kronelignende strukturer. De tar opp lipider og celleavfall og produserer blant annet interleukin 1 beta, interleukin 6, tumornekrosefaktor alfa og CCL2. Disse mediatorene kan forsterke lipolyse, svekke insulinvirkningen og rekruttere ytterligere immunceller [16,17].
Den klassiske inndelingen i antiinflammatoriske M2-makrofager og proinflammatoriske M1-makrofager er pedagogisk nyttig, men biologisk forenklet. Enkeltcelleanalyser viser flere subpopulasjoner, inkludert lipidassosierte makrofager med ulike funksjoner. Noen kan begrense vevsskade ved å håndtere lipider, mens andre driver inflammasjon og fibrose [17].
Også T-celler, B-celler, nøytrofile granulocytter, mastceller og medfødte lymfoide celler deltar. I metabolsk friskt fettvev er regulatoriske T-celler og flere vevsbevarende immunceller relativt fremtredende. Ved obesitas forskyves balansen ofte mot et mer inflammatorisk miljø.
Inflammatoriske kinaser kan hemme insulinets signalveier gjennom endret fosforylering av insulinreseptorsubstrat. Bioaktive lipider som diacylglyseroler og ceramider kan samtidig påvirke intracellulære signalveier i fettvev, lever og muskel. Fettvevsinflammasjon og lipidoverskudd forsterker derfor hverandre [18,19].
Humanstudier viser tydelige sammenhenger mellom fettvevsinflammasjon og insulinresistens, men den fullstendige årsakskjeden er vanskeligere å fastslå hos mennesker enn i dyremodeller. Inflammasjon er en viktig del av adipocyttdysfunksjonen, men ikke den eneste forklaringen på metabolsk sykdom.
Fettvevets ekspansjonsevne og adipocyttdysfunksjon
Ekspansjonshypotesen tar utgangspunkt i at subkutant fettvev har en individuell, begrenset kapasitet til å lagre triglyserider på en trygg måte. Kapasiteten påvirkes av genetikk, alder, kjønnshormoner, tidligere vektutvikling, adipogenese, blodforsyning, ekstracellulær matriks og graden av inflammasjon [2,6].
Når ekspansjonen fungerer godt, skjer følgende:
- Progenitorceller rekrutteres og danner nye adipocytter.
- Kapillærnettet vokser i takt med vevet.
- Ekstracellulær matriks omorganiseres uten uttalt fibrose.
- Adipocyttene beholder insulinfølsomheten.
- Lipolysen hemmes effektivt etter måltid.
- Fettsyrer lagres som relativt inerte triglyserider.
- Adipokinprofilen forblir forholdsvis gunstig.
Når kapasiteten overskrides, dominerer i stedet hypertrofi, hypoksi, fibrose, inflammasjon og insulinresistens. Insulin kan da ikke hemme lipolysen tilstrekkelig, noe som øker tilførselen av frie fettsyrer og glyserol til leveren. Samtidig blir fettvevet dårligere til å ta hånd om sirkulerende triglyseridrike lipoproteiner.
Ekstracellulær matriks har en dobbel rolle. En viss ombygging er nødvendig for ekspansjon, men uttalt kollagenavleiring gjør vevet stivt og begrenser adipocyttenes mulighet til å ekspandere. Fibrose kan dermed fremme cellestress og lipidoverløp selv om den totale fettmassen ikke er ekstrem.
Begrepet personlig fetterskel beskriver at ulike individer utvikler ektopisk fettavleiring og metabolsk dekompensasjon ved ulik total fettmasse. Personer med liten subkutan lagringskapasitet kan derfor utvikle type 2-diabetes ved en relativt lav kroppsmasseindeks, mens andre kan lagre betydelig mer fett subkutant før glukose- og lipidmetabolismen påvirkes alvorlig [6].
Fenotypen metabolsk frisk obesitas er assosiert med mindre leverfett og visceralt fett, bedre subkutan ekspansjonsevne, mindre inflammasjon og bedre kondisjon enn metabolsk syk obesitas. Den skal likevel ikke betraktes som permanent eller risikofri. En stor andel utvikler med tiden metabolske avvik, og risikoen er høyere enn hos metabolsk friske personer uten obesitas [30].
Ektopisk fettavleiring i lever, muskel og pankreas
Ektopisk fettavleiring innebærer at lipider hoper seg opp i eller rundt vev som ikke er spesialisert for langvarig energilagring. Triglyseridlageret er ikke alltid direkte toksisk. Det kan i starten beskytte cellen ved å binde fettsyrer. Skaden er snarere knyttet til kronisk substratoverskudd, utilstrekkelig oksidasjon, inflammasjon og dannelse av reaktive lipidintermediater.
Lever
Leverfett tilføres gjennom flere veier:
- frie fettsyrer fra fettvevets lipolyse
- lipider fra kosten
- hepatisk de novo-lipogenese, hovedsakelig fra karbohydratsubstrater
- sviktende eksport eller oksidasjon av triglyserider
Når leveren blir insulinresistent, kan insulinets hemming av glukoseproduksjonen svekkes, samtidig som den lipogene signaleringen delvis består. Resultatet kan bli en kombinasjon av økt glukoseproduksjon, hyperinsulinemi, vedvarende lipogenese og økt VLDL-sekresjon [19].
Steatotisk leversykdom er nært knyttet til insulinresistens og type 2-diabetes. Sammenhengen er toveis. Diabetes øker risikoen for progressiv leversykdom, mens leversteatose og leverinsulinresistens bidrar til hyperglykemi og aterogen dyslipidemi [20].
Mengden triglyserid alene avgjør ikke om steatosen utvikler seg til inflammasjon og fibrose. Genetiske faktorer, lipidenes sammensetning, oksidativt stress, mitokondriefunksjon, immunrespons og samtidig metabolsk sykdom påvirker risikoen. Leverfett kan forekomme også uten obesitas, særlig ved liten subkutan lagringskapasitet eller genetisk predisposisjon.
Skjelettmuskulatur
Fett i skjelettmuskulatur kan ligge mellom muskelgrupper, mellom muskelfibre eller som små lipiddråper inne i muskelfibrene. Disse depotene har ulik biologisk betydning. Intermuskulært fettvev ligner annet hvitt fettvev og kan bidra til lokal inflammasjon. Intramyocellulære triglyserider er derimot et normalt og raskt tilgjengelig brensel ved fysisk aktivitet.
Høyt innhold av intramyocellulære lipider er ofte assosiert med insulinresistens, men sammenhengen er ikke lineær. Utholdenhetsutøvere kan ha store intramyocellulære triglyseridlagre og samtidig svært god insulinfølsomhet. Dette kalles idrettsutøverparadokset [21].
Forskjellen ligger blant annet i lipidomsetningen. Trente muskler har flere mitokondrier, høy oksidativ kapasitet og små lipiddråper nær mitokondriene. Lipidene omsettes raskt under arbeid. Ved insulinresistens ses oftere større og mer ugunstig lokaliserte lipiddråper samt opphopning av diacylglyseroler, ceramider og andre intermediater som forstyrrer insulinsignaleringen.
Myosteatose er et bredere bildediagnostisk begrep for økt fettinfiltrasjon og redusert muskeltetthet. Den er assosiert med dårligere muskelstyrke, mobilitet og prognose ved flere kroniske sykdommer, men skal ikke likestilles med sarkopeni. Sarkopeni krever nedsatt muskelstyrke og vanligvis redusert muskelmasse eller muskelkvalitet [22].
Pankreas
Fett kan hope seg opp både mellom pankreaslobuli og inne i parenkymets celler. Mengden pankreasfett er assosiert med obesitas, visceral fettopphopning, insulinresistens og type 2-diabetes. Mulige skademekanismer er lokal inflammasjon, oksidativt stress, påvirkning av mikrosirkulasjonen og eksponering av betaceller for toksiske lipidintermediater.
Det er imidlertid vanskeligere å fastslå en direkte årsakssammenheng mellom pankreasfett og betacellesvikt enn mellom leverfett og leverinsulinresistens. Pankreasfett er heterogent fordelt, og målemetodene varierer. Det kan derfor både være en markør for generell ektopisk fettavleiring og en lokal medvirkende faktor til svekket insulinsekresjon [9].
Er ektopisk fett reversibelt?
Ektopisk fett er dynamisk. Vekttap gjennom energiunderskudd reduserer vanligvis leverfett relativt raskt. Fysisk aktivitet kan bedre insulinvirkningen og redusere leverfett også ved begrenset vektendring. I en systematisk oversikt over livsstilsintervensjoner ble ektopisk fett i lever og hjerte redusert, mens resultatene for pankreas og intramyocellulære lipider var mer usikre. Kombinasjonen av kostendring og trening ga større effekt enn trening alene [23].
I skjelettmuskulatur er behandlingsmålet ikke nødvendigvis å eliminere alle intramyocellulære triglyserider. Utholdenhetstrening kan i stedet omorganisere lipiddråpene, øke mitokondrienes kapasitet og bedre lipidomsetningen til tross for uendret eller til og med økt triglyseridmengde [21].
Epikardialt og perivaskulært fett
Definisjoner
Epikardialt fett ligger mellom myokardet og det viscerale perikardet. Det har direkte kontakt med hjertemuskelen og koronarkarene uten skillende fascie og forsynes av koronarsirkulasjonen. Parakardialt fett ligger utenfor det parietale perikardet. Perivaskulært fettvev omgir arterier og arterioler i flere organer [24,25].
Intramyokardialt fett, altså lipiddråper inne i kardiomyocytter, er et annet depot og skal ikke forveksles med epikardialt fettvev.
Fysiologiske funksjoner
Friskt epikardialt og perivaskulært fettvev kan:
- gi mekanisk støtte
- fungere som lokal energireserve
- buffre høye fettsyrekonsentrasjoner
- utskille adiponektin og karrelakserende faktorer
- modulere kartonus og lokal inflammasjon
Fordi depotene ligger direkte inntil myokard og karvegg, kan signalmolekylene deres nå målvevet ved diffusjon eller via karveggens vasa vasorum.
Dysfunksjon
Når depotene ekspanderer, kan de bli hypoksiske og inflammerte. Sekresjonen forskyves da fra adiponektin og karrelakserende mediatorer mot blant annet interleukin 6, tumornekrosefaktor alfa, resistin og oksidative signaler. Dette kan bidra til endoteldysfunksjon, vasokonstriksjon, proliferasjon av glatte muskelceller og fibrotisk ombygging [25,26].
Økt epikardialt fettvolum er assosiert med koronarsykdom og atrieflimmer. Periatrialt fettvev kan tenkes å fremme lokal inflammasjon og atriefibrose. Epikardial fettmengde samvarierer imidlertid sterkt med visceral abdominal fedme, og store deler av evidensen er observasjonsbasert. Det er derfor ikke alltid mulig å avgjøre hvor stor del av risikoen som forårsakes lokalt, og hvor stor del som gjenspeiler generell metabolsk dysfunksjon [25,27].
Epikardialt fett kan måles med ekkokardiografi, computertomografi eller magnetresonanstomografi. Metodene måler delvis ulike egenskaper, og standardiserte kliniske grenseverdier mangler. Målingen brukes derfor først og fremst som supplerende informasjon og i forskning, ikke som et frittstående diagnostisk kriterium.
Lipodystrofi som speilbilde
Lipodystrofi viser tydelig at metabolsk sykdom ikke krever stor total fettmasse. Tilstandene kjennetegnes av generalisert eller partiell mangel på funksjonelt fettvev. De kan være medfødte eller ervervede.
Når trygge subkutane lagre mangler, kan triglyserider ikke lagres normalt. Lipider omdirigeres da til lever, muskel og andre organer. Følgen kan bli:
- alvorlig insulinresistens
- diabetes
- uttalt hypertriglyseridemi
- steatotisk leversykdom og steatohepatitt
- polycystisk ovariesyndrom
- kardiomyopati og hjerte- og karsykdom
Leptinnivåene er særlig lave ved generalisert lipodystrofi, noe som bidrar til hyperfagi og forverret energioverskudd. Lipodystrofi kan derfor betraktes som et biologisk speilbilde av obesitas: i det ene tilfellet finnes mye fettvev som ikke lenger kan lagre energi på en trygg måte, i det andre finnes det for lite funksjonelt fettvev allerede fra starten [28].
Diagnosen er klinisk og bygger på mønsteret av fettap, anamnese, klinisk undersøkelse og metabolsk profil. Kroppsfotografier fra tidligere alder, hudfoldmåling, DXA eller magnetresonanstomografi kan gi støtte. Leptinnivåer overlapper mellom ulike grupper og kan ikke alene bekrefte eller utelukke diagnosen. Genetisk analyse er verdifull ved mistenkt arvelig form [28,29].
Pasienter med de fleste former for lipodystrofi bør følges med tanke på diabetes, dyslipidemi og lever-, nyre- og hjertesykdom. Metreleptin kan bedre hyperfagi, glukosekontroll, triglyserider og leversteatose ved hypoleptinemisk generalisert lipodystrofi og hos utvalgte pasienter med partiell lipodystrofi [28]. Tilgang og godkjente indikasjoner varierer mellom land, og forskrivning i Sverige må vurderes etter gjeldende svenske nasjonale regler.
Metabolsk frisk obesitas og normalvektig metabolsk sykdom
Begrepet metabolsk frisk obesitas beskriver personer med obesitas som på et gitt tidspunkt ikke har diabetes, hypertensjon eller uttalt dyslipidemi. Gruppen har ofte mindre leverfett og visceralt fettvev, mer subkutant fett på bena, mindre fettvevsinflammasjon og bedre kondisjon enn personer med metabolsk syk obesitas [30].
Fenotypen er imidlertid verken enhetlig definert eller stabil. Mange går med økende alder eller fortsatt vektøkning over til metabolsk syk obesitas. Også personer som forblir metabolsk friske, har høyere risiko for enkelte fremtidige komplikasjoner enn metabolsk friske personer uten obesitas.
Den motsatte fenotypen forekommer også: personer med normal kroppsmasseindeks, men mye visceralt fett, leverfett, lav muskelmasse og insulinresistens. Dette understreker at kroppsvekt ikke kan erstatte vurdering av blodtrykk, glukose, blodlipider, midjeomkrets og organpåvirkning.
Vurdering av fettfordeling og ektopisk fett
Antropometri
Kroppsmasseindeks er enkel og nyttig i populasjonsstudier, men skiller ikke fettmasse fra muskelmasse og sier lite om fettfordelingen. Midjeomkrets supplerer kroppsmasseindeks ved å fange opp sentral fettopphopning, men kan ikke skille visceralt fra subkutant bukfett.
Bioimpedans kan estimere total fettmasse, men påvirkes av væskestatus, nylig matinntak, fysisk aktivitet og måleutstyr. Metoden er ikke tilstrekkelig for sikker kvantifisering av visceralt eller ektopisk fett [31].
Bildediagnostikk
| Metode | Styrker | Begrensninger |
|---|---|---|
| Ultralyd | Tilgjengelig, billig, ingen stråling | Operatøravhengig, begrenset presisjon, mild leversteatose kan overses |
| DXA | God for total fettmasse, fett på bena og fettfri masse | Begrenset separasjon av spesifikke organfettdepoter |
| Computertomografi | God separasjon av visceralt og subkutant fett, kan vurdere muskeltetthet | Ioniserende stråling, protokollavhengige måleverdier |
| Magnetresonanstomografi | Nøyaktig volumbestemmelse, ingen ioniserende stråling | Kostnad, tilgjengelighet, krav til standardisert analyse |
| MR-spektroskopi | Kan måle lipider i lever, muskel og myokard | Hovedsakelig forskningsmetode, lite prøvevolum og avansert analyse |
| MRI-PDFF | Kvantitativ og reproduserbar måling av organfett, særlig leverfett | Ressurskrevende og ikke nødvendig for all rutinediagnostikk |
Magnetresonanstomografi har høy presisjon for organfett og fettfordeling. Computertomografi kan gi viktig informasjon når undersøkelsen likevel utføres av annen grunn, men bør ikke bestilles utelukkende for fettmåling uten en tydelig klinisk problemstilling. Bildediagnostiske fettmål mangler dessuten ofte enhetlige kliniske grenseverdier [22,31].
Klinisk tolkning
Hovedbudskapet er at fettvev kan være både beskyttende og sykdomsdrivende. En frisk adipocytt binder energirike fettsyrer i et relativt inert triglyseridlager og beskytter dermed lever, muskel, pankreas, kar og hjerte. Denne funksjonen krever velfungerende adipogenese, karforsyning, insulinsignalering og vevsombygging.
Metabolsk risiko øker når:
- den subkutane lagringskapasiteten er liten
- adipocyttene blir kraftig hypertrofe
- fettvevet blir hypoksisk, fibrotisk og inflammert
- insulin ikke lenger hemmer lipolysen
- adipokinprofilen blir ugunstig
- visceralt og ektopisk fett øker
- muskelens oksidative kapasitet er lav
Fett på feil sted er derfor ofte farligere enn den samme mengden fett i et velfungerende subkutant depot. Dette betyr ikke at stor total fettmasse er ufarlig. Obesitas kan også uten tydelig metabolsk dysfunksjon gi mekaniske, respiratoriske, reproduktive og muskuloskeletale komplikasjoner. Fettfordeling og fettvevsfunksjon forklarer først og fremst hvorfor risikoen varierer så mye mellom personer med lignende kroppsvekt.
Kilder
- Neeland IJ, Poirier P, Després JP. Cardiovascular and Metabolic Heterogeneity of Obesity: Clinical Challenges and Implications for Management. Circulation 2018. PMID: 29581366
- Longo M et al. Adipose Tissue Dysfunction as Determinant of Obesity-Associated Metabolic Complications. International Journal of Molecular Sciences 2019. PMID: 31085992
- Cannon B, Nedergaard J. Brown adipose tissue: function and physiological significance. Physiological Reviews 2004. PMID: 14715917
- Kiefer FW. The significance of beige and brown fat in humans. Endocrine Connections 2017. PMID: 28465400
- Harb E et al. Brown adipose tissue and regulation of human body weight. Diabetes Metabolism Research and Reviews 2023. PMID: 36398906
- Cuthbertson DJ et al. What have human experimental overfeeding studies taught us about adipose tissue expansion and susceptibility to obesity and metabolic complications? International Journal of Obesity 2017. PMID: 28077863
- Favaretto F et al. Adipogenic progenitors in different organs: Pathophysiological implications. Reviews in Endocrine and Metabolic Disorders 2022. PMID: 34716543
- Rabe K et al. Adipokines and insulin resistance. Molecular Medicine 2008. PMID: 19009016
- Gilani A et al. Adipose Signals Regulating Distal Organ Health and Disease. Diabetes 2024. PMID: 38241508
- Landecho MF et al. Relevance of Leptin and Other Adipokines in Obesity-Associated Cardiovascular Risk. Nutrients 2019. PMID: 31694146
- Liu L et al. Adipokines, adiposity, and atherosclerosis. Cellular and Molecular Life Sciences 2022. PMID: 35503385
- Tchernof A, Després JP. Pathophysiology of human visceral obesity: an update. Physiological Reviews 2013. PMID: 23303913
- Piché ME, Tchernof A, Després JP. Obesity Phenotypes, Diabetes, and Cardiovascular Diseases. Circulation Research 2020. PMID: 32437302
- Tramunt B et al. Sex differences in metabolic regulation and diabetes susceptibility. Diabetologia 2020. PMID: 31754750
- Palmer BF, Clegg DJ. The sexual dimorphism of obesity. Molecular and Cellular Endocrinology 2015. PMID: 25578600
- Lee YS, Olefsky J. Chronic tissue inflammation and metabolic disease. Genes and Development 2021. PMID: 33649162
- Li X et al. Adipose tissue macrophages as potential targets for obesity and metabolic diseases. Frontiers in Immunology 2023. PMID: 37153549
- Kojta I, Chacińska M, Błachnio-Zabielska A. Obesity, Bioactive Lipids, and Adipose Tissue Inflammation in Insulin Resistance. Nutrients 2020. PMID: 32375231
- Samuel VT, Shulman GI. The pathogenesis of insulin resistance: integrating signaling pathways and substrate flux. Journal of Clinical Investigation 2016. PMID: 26727229
- Rhee EJ. Nonalcoholic Fatty Liver Disease and Diabetes: An Epidemiological Perspective. Endocrinology and Metabolism 2019. PMID: 31565874
- Gemmink A, Schrauwen P, Hesselink MKC. Exercising your fat metabolism into shape: a muscle-centred view. Diabetologia 2020. PMID: 32529413
- Garcia-Diez AI et al. Myosteatosis: diagnostic significance and assessment by imaging approaches. Quantitative Imaging in Medicine and Surgery 2024. PMID: 39544479
- Hens W et al. The Effect of Lifestyle Interventions on Excess Ectopic Fat Deposition Measured by Noninvasive Techniques in Overweight and Obese Adults: A Systematic Review and Meta-Analysis. Journal of Physical Activity and Health 2016. PMID: 26694194
- Lim S, Meigs JB. Links between ectopic fat and vascular disease in humans. Arteriosclerosis, Thrombosis, and Vascular Biology 2014. PMID: 25035342
- Iozzo P. Myocardial, perivascular, and epicardial fat. Diabetes Care 2011. PMID: 21525485
- Tanaka K, Sata M. Roles of Perivascular Adipose Tissue in the Pathogenesis of Atherosclerosis. Frontiers in Physiology 2018. PMID: 29487532
- Akoumianakis I, Antoniades C. The interplay between adipose tissue and the cardiovascular system: is fat always bad? Cardiovascular Research 2017. PMID: 28582523
- Brown RJ et al. The Diagnosis and Management of Lipodystrophy Syndromes: A Multi-Society Practice Guideline. Journal of Clinical Endocrinology and Metabolism 2016. PMID: 27710244
- Fourman LT et al. A rapid action plan to improve diagnosis and management of lipodystrophy syndromes. Frontiers in Endocrinology 2024. PMID: 38952397
- Blüher M. Metabolically Healthy Obesity. Endocrine Reviews 2020. PMID: 32128581
- Vilalta A et al. Adipose tissue measurement in clinical research for obesity, type 2 diabetes and NAFLD/NASH. Endocrinology, Diabetes and Metabolism 2022. PMID: 35388643